МОРФОЛОГИЧЕСКАЯ ХАРАКТЕРИСТИКА KI-67+ КЛЕТОК ЭПИДЕРМИСА ПРИ РАНЕВОМ ПОВРЕЖДЕНИИ И ВВЕДЕНИИ СЕКРЕТОМА МЕЗЕНХИМАЛЬНЫХ СТРОМАЛЬНЫХ КЛЕТОК
Введение
Пролиферация кератиноцитов базального слоя эпидермиса обеспечивает репарацию дефекта кожи с последующим восстановлением барьерной функции. В области повреждения последовательно развиваются процессы альтерации, экссудации и пролиферации с вовлечением иммунокомпетентных клеток, фибробластов и тучных клеток [1].
Ki-67 экспрессируется в активных фазах клеточного цикла и используется как маркер пролиферирующих клеток. Плотность расположения Ki-67+ клеток характеризует степень вовлечения эпителиоцитов в регенеративный процесс, а площадь Ki-67+ ядер характеризует морфофункциональные особенности уже вошедших в клеточный цикл клеток [2, 3]. Ki-67 участвует в пространственной организации хроматина; морфометрические характеристики ядра зависят от состояния клетки и клеточного цикла. Площадь ядра может отражать изменения его структурно-функционального состояния, связанные с перестройкой хроматина и изменением функциональной активности клетки [2, 3].
Секретом мезенхимальных стромальных клеток содержит растворимые биологически активные факторы и внеклеточные везикулы, способные влиять на миграцию и пролиферацию кератиноцитов, фибробластов и эндотелиальных клеток [4–6]. В экспериментальных моделях применение продуктов мезенхимальных клеток сопровождалось ускорением эпителизации и увеличением количества Ki-67+ клеток [7, 8].
Так, H. Ademi с соавт. (2023) показали, что кондиционированная среда мезенхимальных стромальных клеток жировой ткани содержала значительные количества HGF, FGFb, VEGF, IL-8, TIMP-1, TIMP-4, uPA и других биологически активных факторов и стимулировала пролиферативную активность первичных кератиноцитов человека [9]. Авторы также установили увеличение доли кератиноцитов в S-фазе клеточного цикла при воздействии секретома стромальных клеток, что непосредственно свидетельствует о стимуляции синтеза ДНК и вовлечении клеток в пролиферативный процесс [9].
В эксперименте J.S. Chin с соавт. (2025) установили дозозависимое увеличение пролиферации кератиноцитов HaCaT и фибробластов под действием секретома мезенхимальных стромальных клеток Вартонова студня [10]. В условиях in vitro секретом ускорял закрытие экспериментального дефекта монослоя клеток, а в трехмерной модели кожи усиливал эпителиальную пролиферацию и восстановление эпидермального покрова [10].
При культивировании мезенхимальных стромальных клеток жировой ткани в среде, содержащей лизат тромбоцитов, в секретоме выявлялись многочисленные цитокины и факторы роста, а его применение повышало жизнеспособность и миграционную активность кератиноцитов [11]. Протеомный анализ секретомов мезенхимальных клеток дермы и жировой ткани позволил идентифицировать 867 белков, из которых 663 присутствовали в секретомах обоих типов клеток; среди них обнаружены факторы, участвующие в организации внеклеточного матрикса и регуляции ангиогенеза, включая TGF-β1, ANGPT1, MMP2, MMP9 и TIMP1 [12]. При этом выраженность регенеративного эффекта секретома может отличаться в зависимости от источника мезенхимальных клеток и условий его получения [5, 12].
Цель исследования – осуществить анализ изменения площади ядер и плотности Ki-67+ клеток эпидермиса при одно-, трех- и пятикратном инъекционном введении секретома мезенхимальных стромальных клеток при раневом повреждении кожи.
Материал и методы исследования
Исследование выполнено на материале эксперимента, проведенного в виварии ФГБОУ ВО ЮУГМУ Минздрава России на 56 самцах крыс линии Wistar в возрасте 3,5–5 месяцев и массой 260–320 г. Лабораторные животные были разделены на пять экспериментальных групп: I – интактный контроль (n=4); II – полнослойное повреждение кожи без лечения (n=16); III – повреждение и однократное инъекционное введение Re:Q (n=16); IV – повреждение и трехкратное введение (n=12); V – повреждение и пятикратное введение (n=8). Исследование одобрено этическим комитетом Южно-Уральского государственного медицинского университета (протокол №5 от 08.06.2026) и выполнено с соблюдением международных принципов гуманного обращения с экспериментальными животными в соответствии с решением Совета Евразийской экономической комиссии от 03.11.2016 №81, ГОСТ 33215-2014.
Животных распределяли по экспериментальным группам простой рандомизацией. Гистологические препараты перед морфометрическим исследованием кодировали. Оценка выполнялась без информации о принадлежности гистологического препарата к экспериментальной группе.
Животные интактной группы (n=4) не подвергались моделированию кожного дефекта и введению препарата. Фрагменты кожи животных данной группы обрабатывали по той же гистологической и иммуногистохимической методике, что и материал экспериментальных групп. Модель посттравматической регенерации осуществлялась путем нанесения эксцизионного дефекта панч-биоптатором 52 самцам крыс под общим обезболиванием смесью тилетамина и золазепама (Золетил 100; VIRBAC, Франция) в дозе 50 мг/кг в сочетании с 0,1% раствором атропина (Московский эндокринный завод, Россия) в дозе 0,5 мг/кг. Дефект кожи диаметром 6 мм формировали на спине на 1 см ниже уровня лопаток с помощью устройства для панч-биопсии (Apexmed International B.V., Нидерланды).
В качестве исследуемого средства использовали коммерческий препарат Re:Q 50 (KBBIO Co., Ltd., Республика Корея) – бесклеточный продукт на основе кондиционированной среды мезенхимальных стромальных клеток (MSC-conditioned medium, MSC-CM), содержащий 50% кондиционированной среды МСК жировой ткани. Кондиционированная среда представляет собой культуральный супернатант с цитокинами, факторами роста, пептидами и компонентами внеклеточных везикул – экзосомами. Заявленная производителем чистота экзосом мезенхимальных стромальных клеток жировой ткани составляет 98%, плотность расположения 40 млн частиц/мл, размер частиц 50–200 нм.
Инъекционное введение препарата осуществляли локально в периферическую зону раневого дефекта. Препарат вводили в шесть равноудаленных точек, расположенных по окружности раны. Объем одной инъекции составлял 20 мкл, суммарный объем препарата, вводимого на одну рану за одну процедуру, – 120 мкл. Препарат вводили однократно на 7-е сутки, трехкратно на 7, 10 и 15-е сутки или пятикратно на 7, 10, 15, 20 и 25-е сутки после моделирования повреждения. Животных выводили из эксперимента путем асфиксии углекислым газом.
Фрагменты кожи фиксировали в 10% нейтральном забуференном формалине (pH 7,2) в течение 24 ч, заливали в парафин и изготавливали срезы толщиной 3 мкм. После стандартной гистологической проводки, приготовления парафиновых блоков и срезов проводилось иммуногистохимическое окрашивание препаратов. После депарафинизации и демаскировки антигенов в цитратном буфере при 96–98°C в течение 40 мин использовали антитела к Ki-67 (Antibody System, Китай; RHE46102) в соответствии с инструкцией производителя. Препараты исследовали с помощью микроскопа Leica DMRXA, камеры Leica DFC 290 (Leica, Германия) и программы Image Scope M (ООО «АТМ-практика», Россия). В эпидермисе измеряли площадь ядер Ki-67+ клеток (мкм²) и определяли их плотность (клеток/мм²). Для морфометрических исследований использовали графические файлы в цветовом пространстве RGB в формате *.TIFF, созданных при увеличении 400 (об.×40; ок.×10) и 1000 (об.×100; ок.×10) с использованием масляной иммерсии.
Для каждого экспериментального животного анализировали пять неперекрывающихся полей зрения гистологического препарата. Отдельные поля зрения рассматривали как повторные измерения, вложенные в одно животное; независимой экспериментальной единицей являлось животное (n=4 в каждой группе). Для каждого животного данные представляли в виде медианы и межквартильного диапазона – Me [Q1; Q3]. Межгрупповые различия оценивали с использованием обобщенных оценочных уравнений. Кластерная переменная – животное. Для оценки стандартных ошибок использовали робастную оценку ковариационной матрицы с маловыборочной коррекцией. Попарные сравнения между группами выполняли на основании оценок GEE-модели; для контроля ошибки первого рода при множественных сравнениях применяли поправку Холма. Расчеты выполнены в Excel 2020 и Python 3.13.5 (2026).
Результаты исследования и их обсуждение
Морфометрические характеристики ядра, включая его размер и площадь, связаны с функциональным состоянием клетки, динамикой клеточного цикла и могут использоваться как дополнительный критерий характеристики клеточного состояния [2].
У животных после моделирования травмы (экспериментальная группа II) выявлено увеличение площади Ki-67-позитивных клеток эпидермиса на 14, 21 и 28-е сутки исследования по сравнению с таковой у животных интактной группы. На 45-е сутки наблюдения значимых различий исследуемого показателя по сравнению с таковым у животных экспериментальной группы I не было выявлено.
Установлено, что Ki-67+ экспрессируется на границе ядрышка. При этом при уменьшении экспрессии Ki-67 ядрышки приобретали более округлую форму, происходили изменения организации хроматина в ядре [3].
После однократной инъекции происходило выраженное увеличение исследуемого показателя на 14-е сутки исследования через неделю после введения секретома мезенхимальных стромальных клеток жировой ткани (табл.1). Обращает внимание снижение исследуемого показателя на 21-е сутки наблюдения. На 28-е и 45-е сутки наблюдения площадь Ki-67+ ядер не отличалась по сравнению с показателем у животных экспериментальной группы II. Так, однократное введение секретома приводило к выраженному увеличению исследуемого показателя на ранних сроках исследования (14-е сутки), что может указывать на необходимость повторных введений препарата для образования пролонгированного эффекта.
H. Ademi с соавт. (2023) выяснили, что применение секретома приводило к изменению соотношения Ki-67+ клеток по фазам клеточного цикла. На разных стадиях клеточного цикла морфология ядра отличается, что свидетельствует о том, что площадь Ki-67+ ядер (наряду с формой ядер) может являться критерием нахождения клеток в определенной фазе клеточного цикла [9].
У животных после трехкратной инъекции препарата (экспериментальная группа IV) происходило увеличение площади ядер Ki-67-позитивных клеток на 21-й день эксперимента по сравнению с животными экспериментальных групп I, II и III. На 28-й день наблюдения показатель снижался, а на 45-й день увеличивался по сравнению с животными экспериментальной группы II.
У животных после моделирования травмы кожи не происходило изменения числа Ki-67-позитивных клеток эпидермиса на всех исследуемых сроках (табл.2).
Таблица1
Площадь ядер Ki-67+ клеток эпидермиса при инъекционном применении секретома, мкм²
|
Группа |
14-е сутки |
21-е сутки |
28-е сутки |
45-е сутки |
|
I (контроль) |
13,99 [12,99; 15,00] |
|||
|
II (без лечения) |
18,19 |
17,15 |
19,17 |
14,77 |
|
III (1 инъекция) |
23,40 |
15,47 |
18,45 |
14,75 |
|
IV (3 инъекции) |
– |
24,00 |
13,25 |
16,29 |
|
V (5 инъекций) |
– |
– |
14,07 |
20,14 |
Примечание: составлена авторами на основе полученных данных в ходе исследования. Данные представлены как Me [Q1; Q3]. В каждой группе анализировали четырех животных (n=4); пять полей зрения одного животного рассматривали как повторные измерения, вложенные в животное. a – p < 0,05 по сравнению с группой I; b – p < 0,05 по сравнению с группой II
У крыс после моделирования травмы и однократного инъекционного введения секретома стромальных клеток происходило увеличение исследуемого показателя на 14-е, 21-е сутки по сравнению с таковым у животных экспериментальной группы II (табл.2).
У животных после трехкратного введения секретома увеличивался исследуемый показатель на всех сроках эксперимента по сравнению с животными экспериментальной группы II (рисунок). Обращает на себя внимание увеличение числа пролиферирующих клеток на 28-й день исследования по сравнению с их числом у животных после однократного введения препарата. На 45-е сутки исследования плотность расположения пролиферирующих клеток была выше, чем у животных экспериментальной группы II и не отличалась от таковой у животных с однократным введением секретома.
X. Yang, S. Zhang, K. Chen с соавт. показали, что экзосомы мезенхимальных стромальных клеток жировой ткани усиливали пролиферацию и миграцию кератиноцитов HaCaT по сигнальному пути AKT/HIF-1α [13]. В другом исследовании показали, что miR-4645-5p экзосом подавляла MAPKAPK2-зависимую активацию AKT–mTORC1. Так, происходило восстановление нарушенной аутофагии кератиноцитов и усиление их пролиферации и миграции [14, 15]. При снижении содержания miR-4645-5p регенерация эпидермиса замедлялась.
Таблица2
Плотность Ki-67+ клеток эпидермиса при инъекционном применении секретома, клеток/мм²
|
Группа |
14-е сутки |
21-е сутки |
28-е сутки |
45-е сутки |
|
I (контроль) |
820,34 [797,83; 840,30] |
|||
|
II (без лечения) |
932,14 |
745,08 |
742,53 |
811,80 |
|
III (1 инъекция) |
1243,83 |
1565,83 |
850,37 |
1253,22 |
|
IV (3 инъекции) |
– |
1097,44 |
1165,78 |
1220,99 |
|
V (5 инъекций) |
– |
– |
1608,36 |
1224,88 |
Примечание: составлена авторами на основе полученных данных в ходе исследования. Данные представлены как Me [Q1; Q3]. В каждой группе анализировали четырех животных (n=4); пять полей зрения одного животного рассматривали как повторные измерения, вложенные в животное. a – p < 0,05 по сравнению с группой I; b – p < 0,05 по сравнению с группой II
При пятикратном введении число пролиферирующих клеток эпидермиса увеличивалось, наиболее выраженно на 28-е сутки эксперимента. Обращает внимание, что на 28-е сутки эксперимента увеличение плотности расположения Ki-67+ клеток выявлено по сравнению с группами однократного и трехкратного применения секретома мезенхимальных стромальных клеток.
X. Guo c coавт. (2022) выяснили, что дополнительный механизм влияния секретома связан с регуляцией Wnt/β-catenin сигнального пути [16]. В исследовании влияния экзосом мезенхимальных стромальных клеток на кератиноциты выявлено дозозависимое усиление экспрессии Ki-67 [10, 17, 18].
Выявленное увеличение плотности расположения Ki-67⁺ клеток после применения секретома является результатом влияния ростовых факторов секретома, создающих митогенное и трофическое микроокружение [4, 9, 11]. Экзосомы транспортируют белки и микроРНК, оказывающие влияние на активацию сигнальных путей AKT/HIF-1α, AKT–mTORC1 и Wnt/β-catenin [13, 14, 16]. Изменение активности этих сигнальных путей влияет на жизнеспособность, самообновление и переход клеток в следующую фазу клеточного цикла [9, 10, 18]. Вместе с тем происходит усиление ангиогенеза, регуляция про- и противовоспалительного микроокружения [6, 8, 17]. Выраженность эффекта зависит от состава, концентрации, способа получения и продолжительности воздействия секретома [5, 10, 12]. Еще одним механизмом влияния секретома является транспорт YAP – ключевого белка сигнального пути Hippo, с активацией которого происходит усиление пролиферации и увеличение количества Ki-67⁺ кератиноцитов, утолщение эпидермиса и ускорение реэпителизации [19, 20].
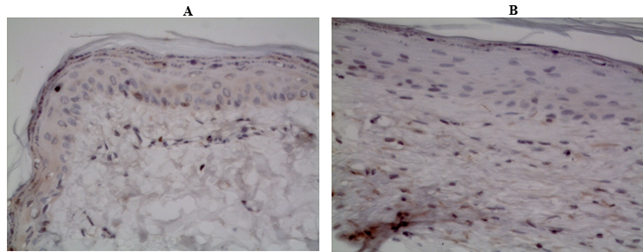
Экспрессия Ki-67 в области повреждения кожи: A – животные после моделирования травмы (группа II); B – животные после трехкратного введения секретома. 21-й день наблюдения. Увеличение числа Ki-67-позитивных клеток у животных после введения секретома. Иммуногистохимическое окрашивание Ki-67.
Докрашивание гематоксилином. Увеличение 400 (х40 об., х10 ок.).
Примечание: составлен авторами по результатам данного исследования
Таким образом, полученные результаты позволяют сделать заключение о том, что инъекционное введение секретома мезенхимальных стромальных клеток жировой ткани приводит к усилению пролиферации клеток эпителия, о чем свидетельствует увеличение площади Ki-67-положительных клеток и увеличение их числа на 1 мм2.
Заключение
Инъекционное введение секретома приводило к увеличению площади ядер Ki-67+ клеток эпидермиса. Плотность расположения Ki-67+ клеток увеличивалась при использовании секретома на большинстве сроков исследования. Увеличение кратности применения секретома приводило к более выраженному увеличению исследуемых показателей на поздних сроках.
Конфликт интересов
Благодарности
Финансирование
Библиографическая ссылка
URL: https://science-education.ru/article/view?id=34770 (дата обращения: 16.11.2026).
DOI: https://doi.org/10.17513/spno.34770